马拉松训练:身体如何适应第 1 章
Endurance and Adaptation
本章目录
本章为你提供马拉松背后的生理学:身体如何为数小时的跑步付费,什么限制了它能利用的氧气量,为什么它能维持的配速低于那个上限,跑一公里的成本是什么;以及将生理学转化为一个赛季的两个想法:为什么体能在训练课之间而非训练课中建立,为什么计划要持续上升数月然后减量。本章教授、、、、和是什么;它不告诉你如何训练、吃什么、喝什么,也不告诉你如何对待自己的身体。
三大供能系统同时为每一步付费
每一次肌肉收缩都由三磷酸腺苷(ATP (三磷酸腺苷))支付,而肌肉中储存的 ATP (三磷酸腺苷) 只够用几秒钟;三个能量系统持续不断地重新合成它:磷酸原系统(phosphagen system)、糖酵解(glycolysis)以及碳水化合物和脂肪的线粒体氧化(mitochondrial oxidation)。
问两个问题:多努力,跑多久。三个系统从第一步起就同时运行;强度和持续时间决定混合比例。 磷酸原系统最快,大约 10 秒耗尽;糖酵解在 15 秒内达到峰值,产生乳酸,支撑半分钟到两分钟的努力;氧化每秒最慢,但能持续数小时。
据一种估算,一次 10 秒全力冲刺大约一半的能量来自磷酸原系统,几乎不来自氧化;一次 30 秒冲刺大约四分之一来自氧化;一场持续数小时的马拉松几乎完全靠氧化供能。
“身体像换挡一样切换系统:同一时间只有一个在运行。” 三个系统从一开始就同时参与,只有各自的份额在变化。 “马拉松是慢速比赛,所以烧脂肪,不需要碳水化合物。” 更慢的跑确实燃烧更多脂肪,但在马拉松强度下碳水化合物仍然提供大量能量,而且是唯一可能耗尽的燃料。 “‘无氧’意味着肌肉缺氧了。” 糖酵解只要跑得快就会产生乳酸,无论氧气供应如何。
最大摄氧量是上限,不是比赛
最大摄氧量(maximal oxygen uptake,VO₂max (最大摄氧量))是身体摄取和利用氧气的最高速率,即氧化系统的上限。 它等于最大心输出量乘以每升血液中提取的氧气量。
在递增负荷测试中,摄氧量随速度上升直到出现平台期,尽管速度仍在增加;平台就是上限。 要找出什么在限制它,就追踪氧气从空气到肌肉的路径。在健康的受训者中,限制在输送端:改变携带或泵送的氧气量,上限就随之移动;训练主要通过更大的每搏输出量和心输出量来提高它。
在 HERITAGE 家庭研究中,481 名久坐的成年人执行同一个 20 周训练方案:VO₂max (最大摄氧量) 平均上升约 400 mL/min,但有些人几乎没有提高,有些人超过 1 L/min,而且反应在家族中聚集。
“受肺的限制:你吸不进足够的空气。” 通气量可以增加十倍以上;上限主要由心脏能输送多少氧气决定。 “VO₂max (最大摄氧量) 最高的赢。” 它是上限,不是比赛:维持上限的比例和每公里的摄氧成本决定谁在上限之下更快。 “同样的训练,同样的提升。” 同一方案下的提升幅度从接近零到超过 40% 不等。
乳酸阈值是可持续配速
乳酸阈值(lactate threshold)是血乳酸首次高于静息水平的强度;更高处是最大乳酸稳态(maximal lactate steady state),即乳酸产生与清除仍能平衡的最快配速。
在递增负荷测试中将血乳酸对速度作图:平坦,第一次上升,然后不停攀升。 最高的稳态大致标志着可持续配速:数小时,不是数分钟。训练将它移到 的更高比例处,即使上限不变:久坐者约 60%,顶尖耐力运动员 75 至 85%。
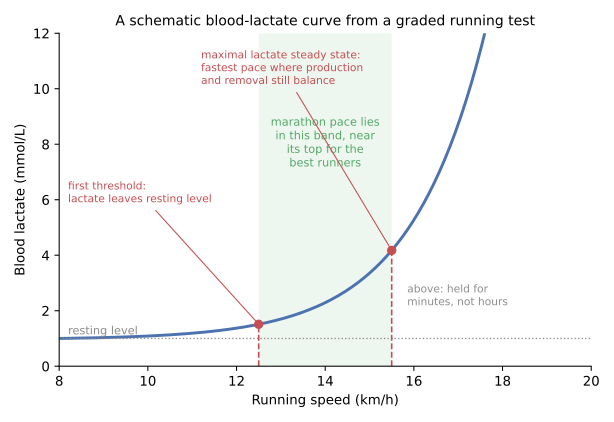
参加 Breaking2 测试的 16 名世界级男性跑者:平均 VO₂max (最大摄氧量) 71 mL/kg/min,乳酸首次上升在 18.9 km/h(占 VO₂max (最大摄氧量) 的 83%),乳酸转折点在 20.2 km/h(92%);两小时马拉松配速 21.1 km/h 略高于两者。
“乳酸是废物:它导致灼烧感和第二天的酸痛。” 乳酸是燃料,被肌肉和心脏燃烧;它的上升标志着糖酵解速率超过清除速率,第二天的酸痛是肌纤维损伤,主要出现在下坡跑之后。 “超过阈值肌肉就缺氧了。” 糖酵解只要跑得快就会产生乳酸,无论氧气供应如何。 “它是一个固定数字:4 mmol/L。” 那只是定位它的众多约定之一;生理学本质是平衡,不是数字。
跑步经济性是一公里的摄氧成本
跑步经济性(running economy)是在给定次最大速度下的稳态摄氧量,即一公里的摄氧成本;经济性更好的跑者在同样速度下消耗更少的氧气。
让跑者以低于的固定速度跑几分钟,测量摄氧量,以每公斤体重每分钟或每公里表示;只在同一速度下比较跑者。 在 VO₂max (最大摄氧量) 相近的训练有素的跑者中,经济性差异可达 30%,在上限相同时预测表现。 任何改变氧气账单的因素都算数:肌纤维和线粒体、呼吸和心脏做功、跑步力学和肌腱弹性、肌肉募集。
Paula Radcliffe 的经济性在 1992 至 2003 年间提高了约 15%,而她的 VO₂max (最大摄氧量) 基本保持稳定:这正是她创造女子马拉松世界纪录 2:15:25 的那些年。
“VO₂max (最大摄氧量) 相同,速度就相同。” 上限相同,经济性差异接近三分之一;更经济的跑者在上限的每一个比例下都更快。 “经济性只是跑姿的问题:修正步态就行了。” 跑者会自发地稳定在最经济的步态上,测量到的跑姿与经济性之间的关联小到中等;肌肉、肌腱和呼吸成本也起作用。 “VO₂max (最大摄氧量) 不再提高,就到顶了。” 经济性在上限停止移动后仍随跑龄增长而持续改善。
Breaking2 的实验室数据展示了经济性、上限和阈值如何组合成一个配速。以下是对发表均值的假设运算:
- 取实测的摄氧成本。 在户外以 21.1 km/h 达到稳态的 7 名运动员,平均每公斤体重每公里消耗 191 mL 氧气。
- 将速度换算为每分钟公里数。 km/min。
- 将成本乘以速度得到摄氧需求。 mL/kg/min 就是这个配速的成本。
- 将需求与上限和阈值比较。 对照平均 VO₂max (最大摄氧量) 71 mL/kg/min,:两小时配速需要上限的约 95%,高于该组 92% 的乳酸转折点。这与 16 人中只有 7 人在该速度达到稳态一致,也说明了为什么这个配速需要同时具备异常高的上限、异常高的可持续比例和异常好的经济性。
常见的失误在第 1 步:在不同速度下比较两名跑者的经济性。每公里的成本随速度变化,所以比较只在同一速度下才有意义。
超负荷、恢复与超量恢复:体能在训练课之间建立
超负荷(overload)是一堂对身体要求高于平时的训练课;超量恢复(supercompensation)是在其后的恢复中重建到略高于原有水平。 适应在训练课之间建立,不是在训练课中。
一堂训练课之后,问什么被扰动了、什么正在被重建:燃料、肌纤维、线粒体、毛细血管、每搏输出量。 然后对这个模式问三件事:每次超负荷是否比上一次多一点(循序渐进),它是否刺激了比赛所需要的(专项性原则),刺激是否在持续(可逆性)。 落在未完成恢复上的训练课叠加疲劳;落在已重建水平上的训练课叠加体能。
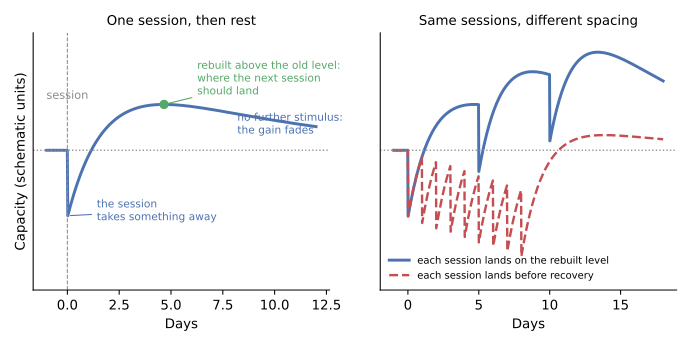
六个月的耐力训练通常使久坐成年人的 VO₂max (最大摄氧量) 提高 15 至 20%;在训练了 9 至 12 个月的 60 至 71 岁男女中,提高幅度从 0 到 43% 不等。 每一个都是在一次恢复中建立起来的。
“你在训练过程中变强。” 一堂艰苦训练课刚结束时,身体是耗竭的、更慢的;重建到高于原有水平发生在之后的数天里。 “多一些总是更好;休息日是浪费。” 恢复是适应发生的地方;伤病在负荷快速上升处聚集。 “体能一旦建立就不会消失。” VO₂max (最大摄氧量) 和血浆容量在停止训练后两周内开始下降;大部分收益在 2 至 8 个月内消失。
Hickson 实验室的维持实验(在卫生总监综述中报道)展示了一堂训练课的哪个部分保住了什么。通过每周六次训练提高了 VO₂max (最大摄氧量) 的人,在减少到每周两到四次时保持了收益;当每次训练课的持续时间削减多达三分之二时,收益的相当部分也被保持了,但前提是缩短后的训练课强度不变;而当强度仅削减三分之一时,接下来的 15 周内 VO₂max (最大摄氧量) 出现了显著下降。 频率和持续时间可以减少;强度是适应所回应的东西。
周期训练与减量期安排负荷,使巅峰落在比赛日
周期训练(periodization)是将训练负荷在数月间安排为不同阶段:通常是一个训练量递增的一般准备期、一个更多接近比赛配速的专项准备期,以及一个减量期(taper),使超负荷与恢复累积为比赛日的巅峰状态。
将任何计划读作在数月间的展开:训练量先上升,然后重点转向比赛配速。 减量期是最后一步:在 2 至 3 周内训练量削减约 40 至 60%,保持强度和频率,使疲劳比体能消退得更快。 在训练有素的耐力运动员中价值约 1 至 3%。
一篇综述中的世界级马拉松跑者围绕春季和秋季马拉松进行周期训练,每次赛后轻松 7 至 14 天,将赛前 5 至 6 个月分为一般准备期和专项准备期,只在最后 7 至 10 天大幅削减训练量。
“减量意味着丢失体能:把错过的长距离跑补回来。” 可逆性需要数周;几天的减量期通过高强度训练课保持体能,同时消除疲劳。 “减量期就是休息。” 强度削减三分之一就会在数周内损失 VO₂max (最大摄氧量);减量期削减训练量、保持强度。 “存在一种被证明的方案。” 比较不同周期训练结构的研究大多发现收益相当;没有直接证据对模型排序。
一场比赛,六个概念综合运用
最后一个假设:Yara 的马拉松,用本章来解读。在她三个半小时的比赛中,她的肌肉几乎完全由氧化供能,这就是;她的糖原是唯一可能在后程耗尽的燃料。她最多能利用多少氧气是她的,主要由她的心脏输出决定;它为她设定了上限,但不决定她的成绩。她维持的配速靠近她的,即乳酸产生与清除仍能平衡的最快速度;在那个配速下每公里花费她多少氧气是她的:两个拥有她同样上限的跑者,仅凭这两项就可能相差许多分钟。
这些没有一样是在比赛日建立的。她带来的每一项能力都是在数月间训练课之间的恢复中建立的,每一堂课都是一次,先降低她再提高她;而安排这些训练课的赛季(先训练量,后比赛配速,最后是一个让疲劳消退而体能保留的减量期)就是。六个概念,一场比赛;她的赛季如何被塑造是教练的问题,为什么那样塑造是本章的问题。
资料来源
- 1 U.S. Department of Health and Human Services, Physical Activity and Health: A Report of the Surgeon General (Atlanta: CDC, 1996), Chapter 3 'Physiologic Responses and Long-Term Adaptations to Exercise', pp. 61–77 — public domain (U.S. Government work); read in the ERIC full-text copy — 来源
- 2 U.S. Department of Health and Human Services, Physical Activity Guidelines for Americans, 2nd edition (Washington, DC: HHS, 2018), Chapter 2 box 'It Is About Overload, Progression, and Specificity', Chapter 7 'Increase Physical Activity Gradually Over Time', and the Glossary — public domain (U.S. Government work) — 来源
- 3 Kyle R. Barnes & Andrew E. Kilding, 'Running economy: measurement, norms, and determining factors', Sports Medicine – Open 1:8 (2015), doi:10.1186/s40798-015-0007-y — CC BY 4.0 — 来源
- 4 Thomas Haugen, Øyvind Sandbakk, Stephen Seiler & Espen Tønnessen, 'The Training Characteristics of World-Class Distance Runners: An Integration of Scientific Literature and Results-Proven Practice', Sports Medicine – Open 8:46 (2022), doi:10.1186/s40798-022-00438-7 — CC BY 4.0 — 来源
- 5 Julien S. Baker, Marie Clare McCormick & Robert A. Robergs, 'Interaction among Skeletal Muscle Metabolic Energy Systems during Intense Exercise', Journal of Nutrition and Metabolism 2010:905612, doi:10.1155/2010/905612 — CC BY — 来源
- 6 Benjamin I. Rapoport, 'Metabolic Factors Limiting Performance in Marathon Runners', PLoS Computational Biology 6(10):e1000960 (2010), doi:10.1371/journal.pcbi.1000960 — CC BY 4.0 — 来源
- 7 Regula Furrer, John A. Hawley & Christoph Handschin, 'The molecular athlete: exercise physiology from mechanisms to medals', Physiological Reviews 103(3):1693–1787 (2023), doi:10.1152/physrev.00017.2022 — CC BY 4.0; §2.1 (principles of training), §3.1 (oxygen transport and VO₂max, Table 1) and §3.6 (how adaptation is brought about) — 来源
- 8 Hermann Heck & Henning Wackerhage, 'The origin of the maximal lactate steady state (MLSS)', BMC Sports Science, Medicine and Rehabilitation 16:36 (2024), doi:10.1186/s13102-024-00827-3 — CC BY 4.0 — 来源
- 9 Gustavo Z. Schaun, 'The Maximal Oxygen Uptake Verification Phase: a Light at the End of the Tunnel?', Sports Medicine – Open 3:44 (2017), doi:10.1186/s40798-017-0112-1 — CC BY 4.0 — 来源
- 10 John Kiely, 'Periodization Theory: Confronting an Inconvenient Truth', Sports Medicine 48:753–764 (2018), doi:10.1007/s40279-017-0823-y — CC BY 4.0 — 来源
- 11 Jules A. A. C. Heuberger et al., 'Repeatability and predictive value of lactate threshold concepts in endurance sports', PLoS ONE 13(11):e0206846 (2018), doi:10.1371/journal.pone.0206846 — CC BY — 来源
- 12 David R. Bassett Jr & Edward T. Howley, 'Limiting factors for maximum oxygen uptake and determinants of endurance performance', Medicine & Science in Sports & Exercise 32(1):70–84 (2000), doi:10.1097/00005768-200001000-00012 (consulted — the abstract's three lines of evidence for the delivery limitation, and 'speed at LT is the best physiological predictor') — 来源
- 13 Claude Bouchard et al., 'Familial aggregation of VO2max response to exercise training: results from the HERITAGE Family Study', Journal of Applied Physiology 87(3):1003–1008 (1999), doi:10.1152/jappl.1999.87.3.1003 (consulted — the numbers in the abstract) — 来源
- 14 Andrew M. Jones, 'The Physiology of the World Record Holder for the Women's Marathon', International Journal of Sports Science & Coaching 1(2):101–116 (2006), doi:10.1260/174795406777641258 (consulted — the abstract: 15 % improvement in running economy between 1992 and 2003; 2:15:25) — 来源
- 15 Andrew M. Jones et al., 'Physiological demands of running at 2-hour marathon race pace', Journal of Applied Physiology 130(2):369–379 (2021), doi:10.1152/japplphysiol.00647.2020 (consulted — the abstract's numbers for the sixteen Breaking2 athletes) — 来源
- 16 Shona L. Halson, 'Monitoring Training Load to Understand Fatigue in Athletes', Sports Medicine 44 Suppl 2:139–147 (2014), doi:10.1007/s40279-014-0253-z (consulted — external versus internal load) — 来源
- 17 David C. Poole, Harry B. Rossiter, George A. Brooks & L. Bruce Gladden, 'The anaerobic threshold: 50+ years of controversy', Journal of Physiology 599(3):737–767 (2021), doi:10.1113/JP279963 (consulted — named for the naming controversy; not adapted) — 来源
- 18 OpenStax Anatomy and Physiology 2e §10.3: Muscle Fiber Contraction and Relaxation (consulted only — CC BY-NC-SA 4.0 at the source on 2026-08-19, not adapted; the ATP-source durations) — 来源
- 19 Wikipedia, 'Breaking2' (consulted for the date and finishing time of the Monza run) — 来源